合作客户/
拜耳公司 |
同济大学 |
联合大学 |
美国保洁 |
美国强生 |
瑞士罗氏 |
相关新闻Info
推荐新闻Info
-
> LB膜分析仪与中子反射联用揭示纤维蛋白原气-水界面逐层自组装新机制
> 基于超低界面张力的延展型表面活性剂分子设计与合成策略
> 延展型表面活性剂的界面张力调控机制与构效关系研究进展
> 煤液化油窄馏分表面张力与密度、沸点关系的关联模型
> 非离子表面活性剂苯环结构对褐煤亲水性改性的关键因素
> LB 膜分析仪应用:橘皮素与硬脂酸、DPPC在气/水界面上的混合单层特性
> 表面活性剂苯环结构增强煤尘润湿性的分子动力学与DFT研究
> 苯环结构对非离子表面活性剂润湿煤尘性能的影响研究
> 单双脂肪酸甘油酯对高蛋白鲜核桃乳液稳定性的调控机制研究
> 从界面张力到微观结构:MG/DG稳定鲜核桃乳液的多尺度解析
LB膜分析仪与中子反射联用揭示纤维蛋白原气-水界面逐层自组装新机制
来源: 浏览 0 次 发布时间:2026-09-17
研究简介:本研究以血液凝血糖蛋白纤维蛋白原为对象,利用中子反射(NR)并结合椭偏仪、LB膜分析技术、小角X射线散射等互补技术,重新审视并修正了主导该领域二十余年的空气—水界面吸附模型。既有认知源自Franses等人基于椭偏仪数据提出的"单层倾斜模型"。低体相浓度下纤维蛋白原以长轴平行于界面排列、层厚约5 nm,随浓度升高分子逐步倾斜,饱和时长轴趋于垂直、层厚可达46 nm,后续铺展膜与和频光谱研究也基本沿袭这一"单层定向渐变"图像。本研究在甘氨酸缓冲液(pH 8.5、低离子强度、蛋白带负电)中跨越0.0075–7.5 g/L的宽浓度区间,并以柠檬酸盐缓冲液(pH≈5、高离子强度、蛋白微带正电)复现原始实验条件以检验普适性,借助空气对比匹配水(8.1% v/v D₂O/H₂O)获取高分辨的単分子层膜界面密度剖面。
结果明确否定了单层倾斜机制,提出全新的"逐层自组装"框架。纤维蛋白原并非以单分子层倾斜直立,而是始终以长轴平行于界面的取向堆积成多个离散层;随体相浓度升高,层厚度增大、浸没层的覆盖度提高,并在部分条件下出现额外的吸附层。各层厚度的差异被归因于界面处单体与二聚体(体相中约37%单体、63%二聚体)不同相互作用所赋予的构象自由度变化,这与纤维蛋白原固有的结构柔性——αC结构域可延展达22 nm、卷曲螺旋区与D/E区连接处可发生弯折,以及straight、straight-bent、central-bent与trans等构象态——高度吻合。逐层组装的驱动力被归结为分子间静电相互作用、氢键与水化效应,以及蛋白自身的构象适应性。该模型在酸性/碱性缓冲液、宽浓度范围及不同离子强度下均得到验证,为理解血—气界面富蛋白液层结痂封闭伤口的机制、急性呼吸窘迫综合征中血浆蛋白较磷脂更强地竞争界面面积而损害肺功能,以及纳米颗粒蛋白冠引发的强烈先天免疫识别等现象提供了新的结构基础。 。
Kibron LB膜分析仪的的应用
采用芬兰 Kibron 公司的 G2 表面压力传感器,配合裁成 10×4 mm 模板的 Whatman 1 号滤纸 Wilhelmy 吊片,在直径 5 cm 的圆形 PTFE 皿中对纤维蛋白原溶液的空气—水界面进行表面压力测定.每次实验前先将吊片在空气中、再在缓冲液界面分别校准,将读数定标为 72.8 与 0 mN/m,从而直接给出表面压力 π,并以抽吸液面的方式定义吸附的零时间点。与椭偏仪(Nanofilm EP4)同步连续测定 3 小时,给出跨三个数量级体相浓度(0.0075–7.5 g/L)的吸附动力学——π 的起始值随浓度升高而增大,并随时间持续上升,直接证明蛋白在界面不断富集。作为关键的"交叉判据",将椭偏相移 dΔ 对 π 作图,发现在同一表面压力下 dΔ 仍随体相浓度系统性增大,说明高浓度样品形成了更厚实、含更多蛋白的界面结构,这已超出单一单层所能解释的范围。Kibron 测得的 π(表面压力) 与椭偏 dΔ 联用显示:同为 0.75 g/L 时柠檬酸盐体系的 dΔ 约为甘氨酸体系的两倍而 π 仅略高,且未抽吸(No Vac)样品的 π 更高,据此判读出柠檬酸盐中膜更厚实、且存在动力学俘获蛋白,为后续 NR 给出四层结构模型提供了动力学层面的旁证。。
实验结果
纤维蛋白原以单体与二聚体(体相约 1:2)为单元,始终保持长轴平行于界面,自组装为离散的分层结构;多数样品的最优拟合需要 4 个分层,且随体相浓度升高,层厚增大、浸没层覆盖度提高、层数增多,较下层富含"弯折"构象、层间粗糙度更高。该机制在酸性(柠檬酸盐)与微碱性(甘氨酸)缓冲液、跨两个数量级的体相浓度及不同离子强度下均成立,具有普适性。类聚电解质多层的静电作用(二聚体外表面 D 结构域富含精氨酸等带电残基)、类聚合物多层的氢键与水化作用(D、E 结构域疏水残基促进界面密堆),以及纤维蛋白原固有的构象适应性——层厚与粗糙度的浓度依赖源于其为适应限域变化而具有的不同构象能。该平行吸附模型也印证了扩张流变测得的低弹性,并与甘氨酸缓冲液抑制二聚体以上自聚集的 SAXS 结果一致.同时解释了原始椭偏数据何以与新模型大体相容(dΔ 偏差 <20%),只是单层模型在复杂组装体系中的固有局限导致了长期误判。纤维蛋白原可形成紧实的或分层的界面组装体,而非简单的单分子层,这预计会影响富蛋白介质中结合位点的可及性与界面行为。。
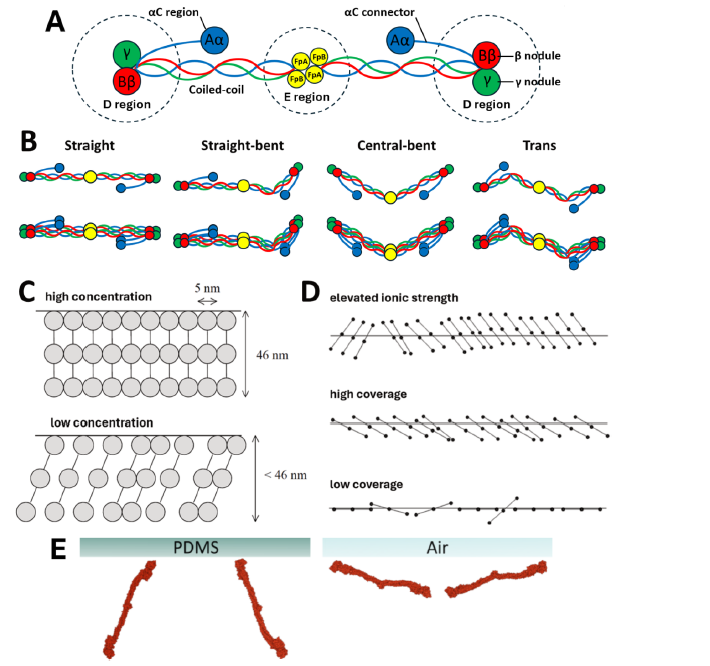
图1、(A) 含有三对多肽链(Aα、Bβ 和 γ)的纤维蛋白原分子示意图。两端的 D 段含有 β 和 γ 节点,中央的 E 段包含纤维蛋白肽 A(FpA)和 B(FpB),而螺旋-螺旋结构将 D 段与 E 段连接起来,αC 区域通过柔性的 αC 连接器向外延伸。(B) 纤维蛋白原单体(上行一行)和二聚体(下行一行)四种主要且不同的构象:直型、直弯型、中心弯型和反式构象。(C) Franses 及其同事、(D) Miller 及其同事和 (E) Weidner 及其同事的研究成果,其中纤维蛋白原以倾斜的单分子层形式呈现于不同缓冲液、离子强度以及不同体积浓度和界面条件下,PDMS 表示聚二甲基硅氧烷。
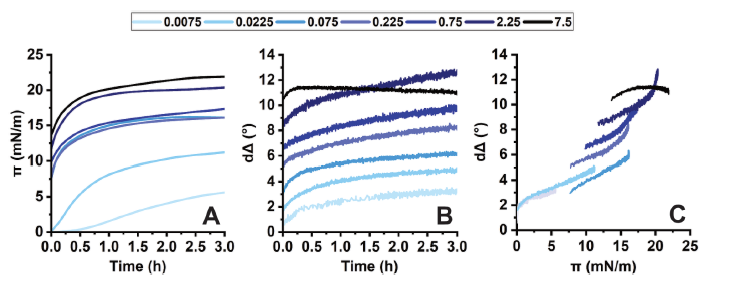
图2、在pH 8.5的甘氨酸缓冲液中,不同浓度纤维蛋白原溶液的吸附动力学数据通过以下方法测定。(A) 表面张力法,其中π为表面压力。(B) 椭圆度法,其中dΔ为相位偏移。(C) 将dΔ作为π的函数绘制,并将π值线性插值到椭圆度法的时间点上,以比较响应结果。
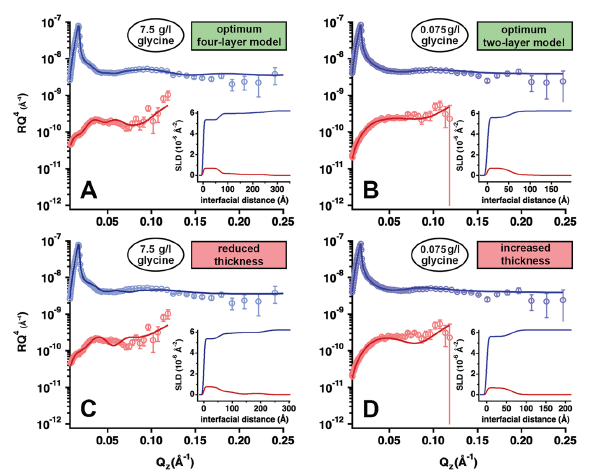
图3、中性子反射率数据(点)以及在两种同位素对比条件下吸附的纤维蛋白原优化模型拟合结果(线),分别对应:(A) pH 8.5、甘氨酸缓冲液浓度为7.5 g/L的溶液,模型包含4层,每层厚度66 Å;(B) pH 8.5、甘氨酸缓冲液浓度为0.075 g/L的溶液,模型包含2层,每层厚度54 Å;(C) pH 8.5、甘氨酸缓冲液浓度为7.5 g/L的溶液,模型包含4层,每层厚度54 Å,其中优化模型的χ²值从4.8增加至15.5;(D) pH 8.5、甘氨酸缓冲液浓度为0.075 g/L的溶液,模型包含2层,每层厚度66 Å,其中优化模型的χ²值从3.5增加至9.0。
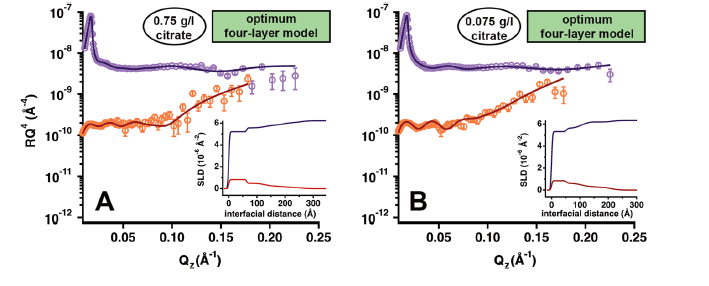
图4、中性子反射率数据(点)以及在两种同位素对比条件下吸附的纤维蛋白原优化模型拟合结果(线),分别对应于(A)0.75 g/L和(B)0.075 g/L的柠檬酸缓冲液中的纤维蛋白原溶液,模型包含4层,每层厚度分别为65 Å和55 Å。
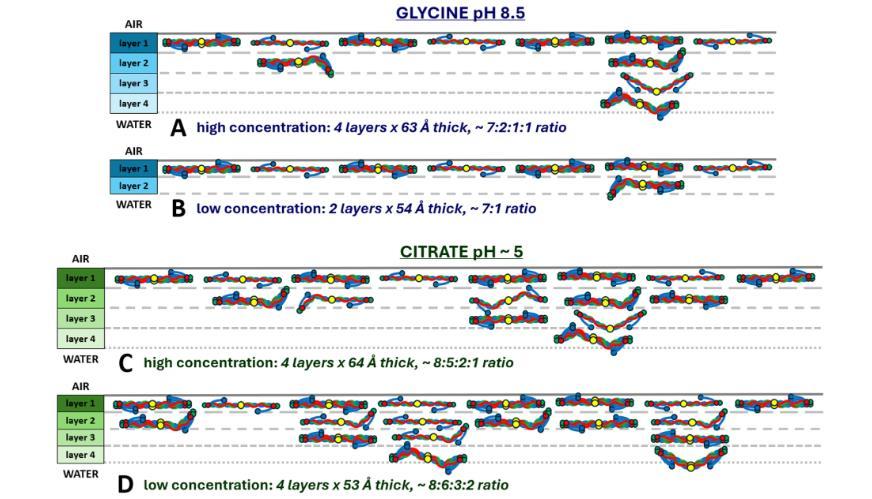
图5、展示了新建立的纤维蛋白原在气-水界面逐层自组装结构模型,该模型与相对体积浓度及缓冲条件相关:在较低体积浓度下,各层结构更紧密,构象自由度降低;而在较高体积浓度下,底层尤其具有更大的覆盖面积。尽管在此示意图中单体与二聚体的比例约为1:2,这与使用SAXS法在pH 8.5、甘氨酸缓冲液中0.5 g/L纤维蛋白原溶液中测定的结果一致,但因单体/二聚体的空间分布尚未解析,因此这些组分在不同层中的位置是任意设定的。相较于上层,更多“弯曲”构象集中在底层,这与界面粗糙度增加的趋势相吻合。
总结
本研究利用中子反射技术并结合多种互补手段,在流体界面上解析了血液凝血糖蛋白纤维蛋白原的逐层自组装结构,揭示出一种与长期确立的吸附模型相矛盾的出人意料的机制。二十多年前由椭偏仪数据推断并广为接受的单层倾斜模型认为,随着界面覆盖度增加,纤维蛋白原单分子层会逐渐倾斜——由与界面平行逐步转向垂直,直至饱和时分子采取更为竖直的构象。我们的新结构框架则与此根本不同:纤维蛋白原被明确证实以平行于界面的取向存在于多个离散层之中,且随体相浓度升高,层厚度增加、浸没层覆盖度增大,在某些情况下还会出现额外的层。层厚度的差异可归因于界面处不同单体/二聚体相互作用所带来的构象自由度变化。
文中从分子间静电相互作用、氢键与水化作用以及构象适应性三个方面讨论了逐层自组装的驱动力。在酸性及碱性缓冲液中、跨越宽泛的体相浓度范围并在不同离子强度下开展的实验数据,证明了我们新模型的普适适用性。这些新发现对界面蛋白行为具有广泛意义,有助于解释血液富蛋白流体界面处通过结痂封闭开放性伤口的机制、急性呼吸窘迫综合征患者中血浆蛋白较磷脂更强地竞争界面面积而损害肺功能的现象,以及纳米颗粒蛋白冠所引发的强烈先天免疫识别。